Artículo de revisión
Vol. 10 | Núm. 3 (Diciembre 2025)
28 min
Relación de receptores hormonales y respuesta a esteroides: ¿qué aporta la biología molecular?
Relationship between hormone receptors and steroid response: what does molecular biology contribute?
Rocío T. Martínez-Núñez¹*
1. Departamento de Enfermedades Infecciosas, School of Immunology and Microbial Sciences, King’s College London, Londres, Reino Unido
*Correspondencia:
Rocío T. Martínez-Núñez. rocio.martinez_nunez@kcl.ac.uk
Recepción:
24/11/2025
Aceptación:
02/12/2025
Publicación:
19/12/2025
Métricas
631
Visualizaciones
26
Descargas
Compartir
Compartir
Resumen (ES)
El ser humano presenta dimorfismo sexual: la condición de dos sexos de la misma especie de mostrar diferencias físicas o de comportamiento que no están directamente involucradas en la reproducción. Este dimorfismo resulta de diferencias hormonales y cromosómicas entre los sexos. Cada sexo tiene predominancia de expresión de determinadas hormonas derivadas del colesterol, que también es la fuente de síntesis de esteroides endógenos. Las hormonas juegan un papel fundamental en el estado de activación del sistema inmune entre varones y hembras, con funciones mucho más allá de las atribuidas a la reproducción y desarrollo sexual. Asimismo, se han observado diferentes respuestas a glucocorticoides entre sexos. La biología molecular permite investigar estas posibles interacciones, combinando ingeniería genética y técnicas avanzadas para la detección de miles de moléculas simultáneamente. En esta revisión se describen las principales vías de síntesis de compuestos esteroideos, así como su acción y la presencia de receptores combinando bibliografía y búsquedas en bases de datos. También se describen diferencias observadas entre sexos en el sistema inmune, en la respuesta a esteroides y se discuten posibles vías de interacción entre hormonas y respuestas a glucocorticoides.
Palabras clave (ES):
Hormonas
Dimorfismo
Esteroides
Biología molecular
Receptores
Secuenciación
Resumen (EN)
Humans exhibit sexual dimorphism: the condition in which two sexes of the same species display physical or behavioral differences that are not directly involved in reproduction. This dimorphism results from hormonal and chromosomal differences between the sexes. Each sex shows predominant expression of specific hormones derived from cholesterol, which is also the source for the synthesis of endogenous steroids. Hormones play a fundamental role in the activation state of the immune system in males and females, with functions extending far beyond reproduction and sexual development. Likewise, different responses to glucocorticoids have been observed between sexes. Molecular biology makes it possible to investigate these potential interactions by combining genetic engineering with advanced techniques that allow the simultaneous detection of thousands of molecules.
This review describes the main pathways of steroid compound synthesis, as well as their actions and receptor presence, integrating the literature and database searches. It also outlines sex-related differences observed in the immune system and in steroid responses, and discusses possible pathways of interaction between hormones and glucocorticoid responses.
Palabras clave (EN):
Hormones
Dimorphism
Steroids
Molecular biology
Receptors
Sequencing
Introducción
El ser humano presenta dimorfismo sexual debido fundamentalmente a la presencia de diferentes cromosomas y niveles hormonales, principalmente en los niveles de testosterona, estrógenos y progesterona. Los niveles hormonales no son estáticos, y varían dependiendo de la edad, con fluctuaciones más extremas en hembras. A nivel cromosómico, individuos con XX deben inactivar uno de los cromosomas1 para no tener el doble de dotación génica que aquellos con XY, y por tanto presentando un solo cromosoma X. El cromosoma X contiene múltiples genes que codifican componentes importantes para la respuesta inmune, como receptores para citoquinas2. En el presente trabajo, el término “sexo biológico” se refiere a las diferencias causadas por la presencia de XX y XY en humanos. Los términos utilizados para hablar de individuos XX o XY serán hembras y varones, respectivamente, refiriéndose a la biología determinada por la composición de cromosomas. Reservamos los términos “hombre” y “mujer”, ya que también pueden tener connotaciones sociales que van más allá de esta revisión.
Asimismo, el término “esteroide” suele utilizarse en el ámbito clínico en referencia a glucocorticoides, potentes antiinflamatorios. Se estima que el 1% de la población mundial toma esteroides, y que hasta un 40% de los esteroides recetados están dedicados a tratar enfermedades respiratorias3,4. A pesar de varios estudios demostrando las diferencias claras entre los sistemas inmunes de varones y hembras, la prevalencia de enfermedades autoinmunes en hembras5, o la diferencia en la respuesta y niveles a esteroides, en la práctica clínica no se ajustan las dosis dependiendo del sexo del paciente. Aún se considera que tratar una patología de modo diferente entre sexos se circunscribe al ámbito de ginecología o urología. Dada la cantidad de información, observaciones y evidencia, este artículo es también una llamada a reconsiderar cómo investigamos – cómo se diagnostican y tratan – individuos de diferentes sexos. La medicina personalizada debe ir más allá de interacciones genéticas complejas y comenzar por diferencias básicas en las que la mitad de la población del planeta presenta claras diferencias a la otra mitad.
Este artículo informa acerca de las diferencias de sexo en el sistema inmune, para poder entender diferencias en la respuesta a esteroides y su potencial interacción con la diferente distribución de receptores hormonales.
Síntesis de glucocorticoides y hormonas
Para poder entender las potenciales interacciones entre receptores hormonales y esteroides, es importante destacar las principales vías de regulación y síntesis de ambos, los receptores principales y su modo de acción.
La producción de glucocorticoides está controlada por el sistema hipotálamo-pituitario-adrenal (HPA). El hipotálamo secreta la hormona liberadora de corticotropina (CRH) que estimula la liberación de la hormona adenocorticotrópica (ACTH) en la hipófisis (o glándula pituitaria). La ACTH llega a las glándulas adrenales a través de la circulación, donde estimula la producción de cortisol. La mayor parte del cortisol en sangre está unida a proteínas (a albúmina o a la globulina de unión de cortisol (CBG)). Solo el cortisol libre es la forma activa6. La forma inactiva (cortisona, Figura 1) puede convertirse a activa en la mayor parte de los tejidos, mientras que la 11-βHSD2 inactiva el cortisol convirtiéndolo a cortisona en el riñón y páncreas6,7. Los glucocorticoides también pueden sintetizarse en otros órganos como el sistema inmune, el cerebro o el epitelio en el pulmón8,9. Por lo tanto, se debe tener en cuenta la producción de glucocorticoides localizada cuando consideramos posibles interacciones con otras vías.
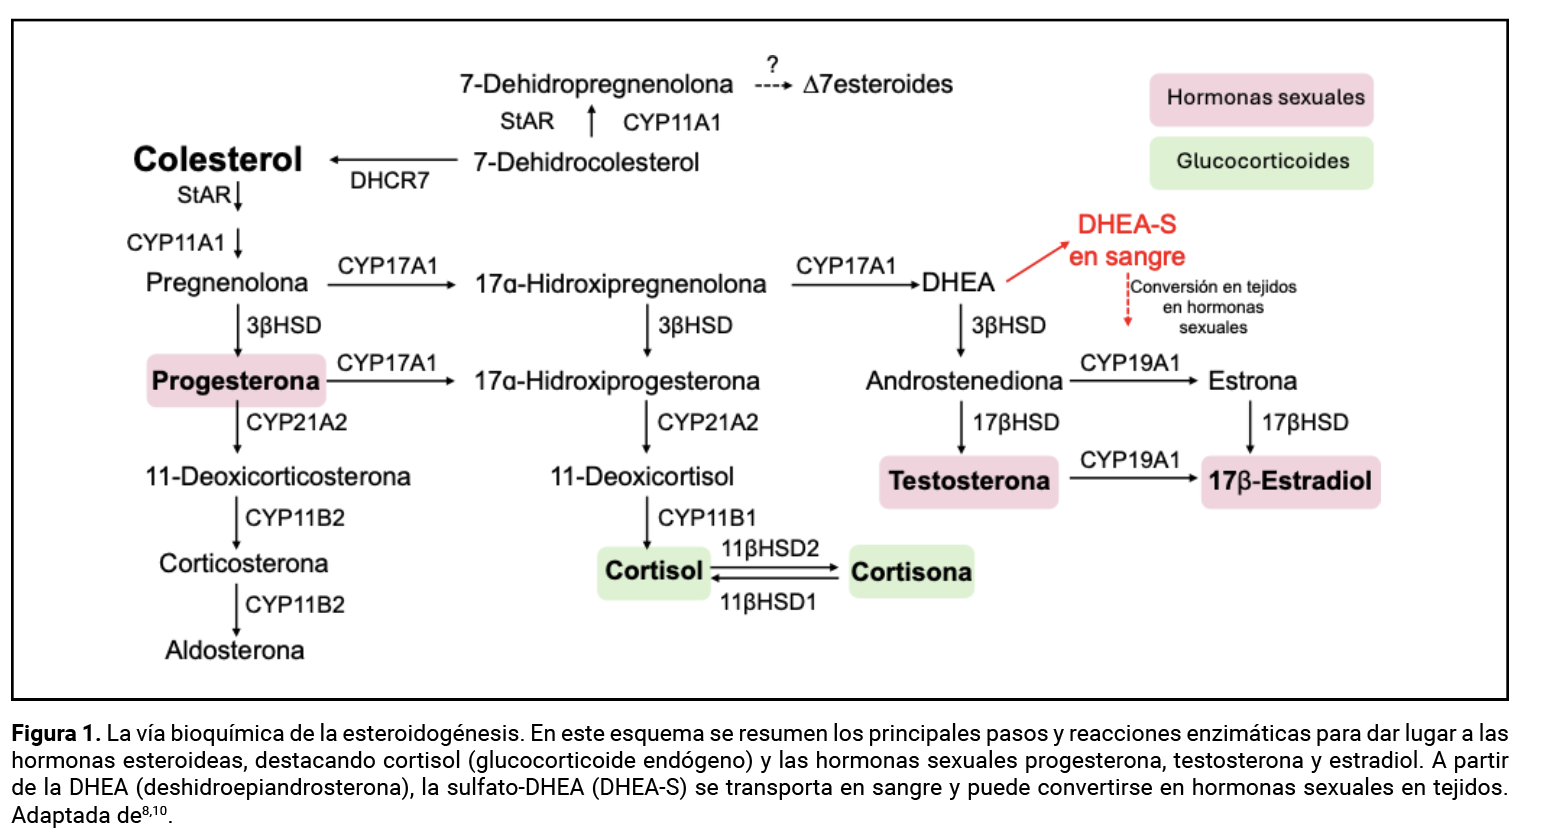
En el caso de las hormonas sexuales, la síntesis es iniciada por la secreción de GnRH (hormona de liberación de gonadotropina) por parte del hipotálamo, que a través del sistema porta hipotálamo-hipofisario estimula la hipófisis anterior para que secrete hormona luteinizante (LH) y hormona estimulante de folículos (FSH). Estas hormonas llegan a través de la sangre a las gónadas, encargadas de producir hormonas sexuales a partir del colesterol: progesterona, testosterona y estrógenos. Aunque las hormonas sexuales se producen principalmente en las gónadas, también pueden ser sintetizadas por las glándulas adrenales y por la placenta durante el embarazo10.
Tanto los esteroides endógenos, cortisol y cortisona, como las hormonas sexuales se derivan del colesterol a través de una serie de reacciones catalizadas por hidroxilasas, liasas, aromatasas y reductasas (Figura 1).
Los glucocorticoides se producen comenzando con la movilización de colesterol desde la membrana mitocondrial externa a la interna, mediado por StAR (proteína reguladora esteroidogénica aguda). La expresión de StAR puede modificarse por múltiples estímulos, incluidos AMP cíclico/kinasa A o kinasa C8,10. La testosterona y 17-βestradiol tienen como precursor común la androstenediona. Además, el 17-βestradiol puede derivarse tanto de la estrona como de la testosterona, y por tanto, su producción está regulada y puede verse alterada por múltiples vías.
Receptores esteroideos: expresión y modo de acción
Los receptores hormonales pueden presentarse en la membrana citoplasmática, el citoplasma o el núcleo de las células. Diferentes localizaciones intracelulares suelen estar relacionadas con diferentes modos de acción. La señalización por hormonas y glucocorticoides más estudiada se produce a través de receptores nucleares.
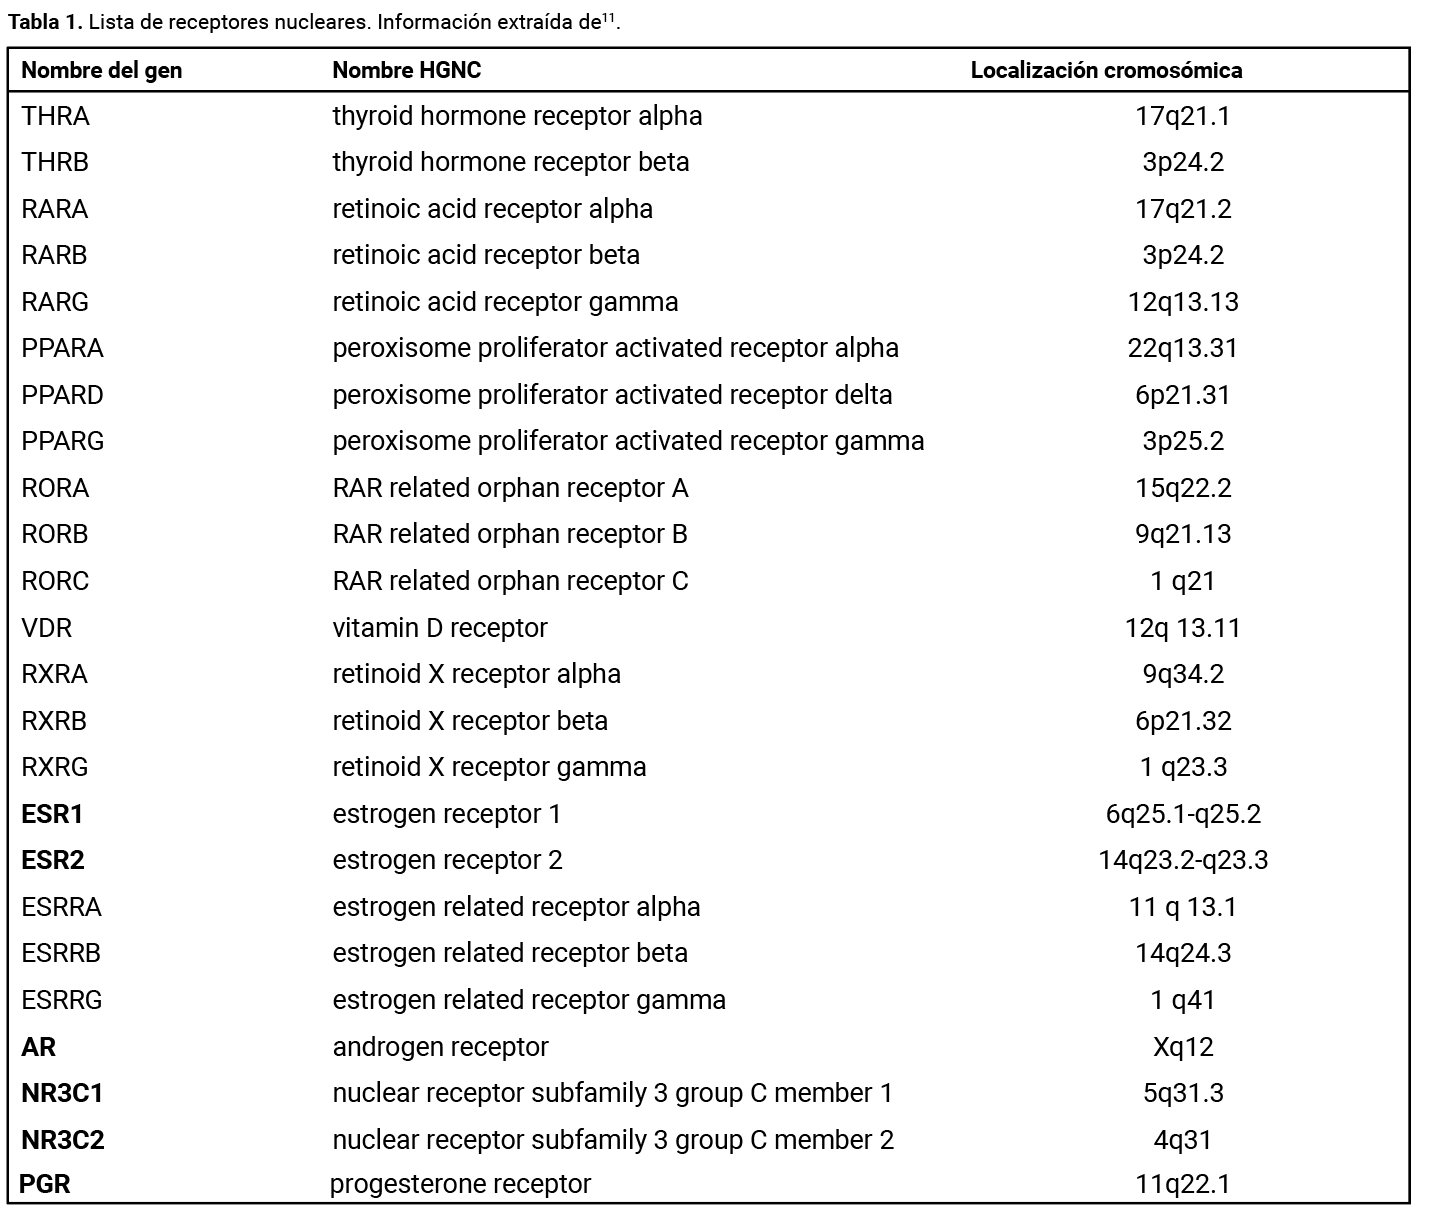
La Tabla 1 presenta una selección de receptores nucleares11 con su símbolo oficial HGNC (HUGO Gene Nomenclature Committee), entre los que se encuentran destacados el receptor a glucocorticoides (NR3C1), a mineralocorticoides (NR3C2), receptores de estrógenos alfa (ESR1) y beta (ESR2), el receptor de andrógenos (AR) y el de la progesterona (PGR). Los otros receptores en la tabla muestran ejemplos relevantes en el sistema inmune y pulmón, como el receptor de hormonas tiroideas, de ácido retinoico y retinoide X, receptores de proliferación de peroxisomas, vitamina D o RAR.
Los receptores de esteroides están expresados ubicuamente en el cuerpo. La ausencia del principal receptor de glucocorticoides (RG) es incompatible con la vida12. Los ratones sin RG mueren al poco de nacer de insuficiencia respiratoria, remarcando el importante papel de los glucocorticoides endógenos para el desarrollo pulmonar12.
El receptor de glucocorticoides puede señalizar de tres modos diferentes13 , a nivel de transcripción de ADN en ARN. Es importante destacar que tanto los glucocorticoides como las hormonas sexuales pueden ejercer mecanismos de acción ‘no genómicos’, esto es, mecanismos de acción en otros compartimentos de la célula que no son el control directo de la transcripción de genes en el núcleo. Los glucocorticoides se unen al RG en el citoplasma, donde se encuentra inactivo y unido la chaperona HSP70 y reactivado por HSP9014. Una vez unido al glucocorticoide, el receptor se considera activo y se transloca al núcleo, donde dimeriza y une secuencias específicas de ADN (elementos de unión a glucocorticoides), reclutando activadores o represores de transcripción. Más frecuentemente, el receptor se une indirectamente a través de otros factores de transcripción como AP-115-17, factores que regulan procesos inflamatorios. Los glucocorticoides también pueden ejercer regulación a nivel de ARN mensajero, incrementando su inestabilidad18,19 o su unión a ribosomas20, las fábricas de proteínas celulares. Por lo tanto, los glucocorticoides ejercen efectos que van más allá de activar/inhibir la transcripción. Junto con la expresión de RG en múltiples tejidos, el modo de acción variado de los glucocorticoides a nivel molecular explica su acción pleiotrópica en múltiples órganos. Asimismo, es posible que los diferentes modos de acción intracelulares contribuyan a los efectos considerados secundarios de la terapia con esteroides, entre los que destacan el riesgo de diabetes, obesidad, osteoporosis o depresión6,7.
Los receptores hormonales también están presentes en múltiples tejidos, más allá de las gónadas. Los estrógenos pueden activar cascadas de señalización por diferentes vías. La más conocida es la unión al receptor de estrógenos en el citoplasma y su translocación al núcleo, donde ejerce activación o inhibición de la transcripción de genes que presentan secuencias de respuesta a estrógenos16. Asimismo, pueden unirse a los receptores de estrógenos asociados con otras proteínas, que en su conjunto van al núcleo para modificar la transcripción de genes. Los receptores de estrógenos también pueden estar en la membrana citoplasmática y, junto con la proteína GPR30, ejercer señalización a través de ERK o señalizar sin ligando a través de Ras/MAPK21. Además, los receptores de estrógenos también ejercen cambios post-transcripcionales, como modular la expresión de proteínas sin alterar los niveles de su ARN mensajero codificante22 revisado en23. Por lo tanto, los efectos de los estrógenos son variados y dependerán del contexto celular, lo cual puede explicar las diferencias que se observan en sus efectos, por ejemplo, entre sexos, como se discute más adelante. La señalización de progesterona24,25 y testosterona26 es muy semejante, ya que tienen sus elementos de unión directa al ADN, o pueden ejercer efectos no genómicos, revisados en27.
El estudio inicial que determinó el sitio de unión a glucocorticoides lo comparó con el de la progesterona, que los autores concluyeron era “si no igual, muy semejante” en 198728. Las secuencias de consenso de unión en el ADN para los receptores de glucocorticoides, andrógenos, mineralocorticoides y progesterona son AGAACAnnnTGTTCT29 o, más específicamente, una ampliación a 17 nucleótidos en el caso de los glucocorticoides (ACAGnACAATnCTGTnCC30) que suele acortarse a AGAAC. La secuencia de unión de los receptores de estrógenos α y β es AGGTCAnnnTGACCT29. Determinar las secuencias de unión permite hacer análisis predictivo bioinformático en los promotores de genes para inferir su respuesta a hormonas. Estos análisis muestran que hay más de 10.000 genes que contienen secuencias que potencialmente pueden ser unidas por glucocorticoides; sin embargo, los glucocorticoides (al igual que las hormonas sexuales) solo regulan cientos de genes13. Por tanto, es importante considerar otros aspectos como la estructura de la región de cromatina o la presencia de otros reguladores. Además, los sitios de unión difieren entre distintos tipos celulares, -otra capa de regulación de acción a los glucocorticoides. Las secuencias en sitios del genoma que presentan conservación entre especies generalmente conllevan un aumento de la transcripción31, pero no represión de la expresión de genes, que es el mecanismo generalmente asociado al tratamiento con esteroides. El análisis usando vectores que reportan la unión de RG a ADN ha mostrado que la unión directa a secuencias de ADN conlleva función de activación, mientras que los sitios a los que accede por otros factores no, y que la actividad de este segundo tipo de sitios depende de su cercanía a sitios directos de unión. Parece que la acción de los glucocorticoides a nivel de transcripción es un modelo sinergético y coordinado, en vez de eventos que ocurren independientemente y que se añaden32. Este modelo de agrupamiento de factores de transcripción también parece reflejar el mecanismo de acción transcripcional de los estrógenos32.
Dimorfismo sexual cromosómico: ¿inmunidad asociada al X?
Además de diferencias en los niveles de hormonas, el ser humano presenta diferencias cromosómicas entre hembras (XX) y varones (XY), y las principales enfermedades que afectan a cada sexo son diferentes. Las enfermedades inmunes son más frecuentes en hembras, donde la presencia de determinadas patologías autoinmunes tiene una incidencia mucho mayor5,33, teniendo en cuenta factores socioeconómicos. Estas diferencias tan grandes no se explican solamente por diferencias en niveles de hormonas, sino por la presencia de diferentes dotaciones cromosómicas. El cromosoma X contiene más de 50 genes con función en el sistema inmune2, como receptores de interleucina 13 y Toll 7 y 8 (TLR7, TLR8), encargados de reconocer ácidos nucleicos patogénicos, las señales principales que inician una respuesta antiviral. El gen codificante para los receptores de andrógenos está también en el X.
La dotación cromosómica se compensa inactivando un cromosoma X, un fenómeno que Mary Lyon descubrió en los años 601. Casi 30 años más tarde, se descubrió que era llevada a cabo por un ARN no codificante llamado XIST34,35. Esta inactivación parece ser al azar y ocurre rápidamente en el desarrollo embrionario; el cromosoma X que expresa XIST es el cromosoma que se inactiva (inactivación en cis) por una serie de modificaciones en la cromatina de ADN, que aparece decorada con el ARN de XIST36. La unión de XIST conlleva la condensación del cromosoma X por metilación en lo que se llama cuerpo de Barr, visible en el núcleo de células XX37. Sin embargo, no todos los genes presentes en el cromosoma X se inactivan por igual, y hay varios que “escapan”, como ocurre con TLR7 en las células inmunes de hembras38. Asimismo, hay diferencias en la expresión de genes entre sexos presentes tanto en los cromosomas X e Y, como en autosomas en las células inmunes39. A pesar de estos hechos, el análisis de datos de secuenciación no suele dividirse entre sexos, lo cual lleva a sesgos en los resultados. Otro ejemplo de sesgo son múltiples estudios GWAS (genome-wide association studies por sus siglas en inglés) para determinar la presencia de mutaciones asociadas con enfermedades, que excluyen los cromosomas X e Y por añadir complejidad.
Dimorfismo sexual en la respuesta a hormonas esteroideas: una combinación de factores celulares y moleculares
El dimorfismo sexual en la respuesta a esteroides se ha estudiado en modelos animales, donde gonadectomías permiten investigar el efecto de la ausencia de hormonas sexuales y la adición exógena de hormonas individuales en cada sexo. Estudios en ratas apuntan a que los machos presentan mayor biodisponibilidad de cortisol al tener disminución de los niveles de CBG después de estrés40 o por el efecto de la testosterona41, que administrada en hembras disminuye los valores de la proteína de unión (y secuestro) de cortisol CBG42. Se ha detectado doble capacidad de unión a cortisol de la CBG en ratas hembra, que aumenta tras una gonadectomía o administración de estrógenos en los machos42. Asimismo, una gonadectomía antes de la inyección de testosterona puede restaurar la actividad de CBG. Aunque los autores concluyeron que la testosterona suprime la actividad de CBG, las diferencias mostradas entre machos y hembras sugieren que los estrógenos ‘secuestran’ cortisol. Las glándulas adrenales también presentan dimorfismo sexual. Mientras que ratas hembra presentan crecimiento y desarrollo adrenal durante la pubertad (ausente en los machos), estas diferencias desaparecen cuando el gen codificante de la CBG, SerpineA6, se elimina usando CRISPR/Cas943, una herramienta de ingeniería genética que permite dirigir la nucleasa Cas9 a determinadas regiones del genoma, guiada por pequeños ARNs complementarios a la zona que quiere modificarse44. En ratas sin CBG, la diferencia de desarrollo adrenal desapareció entre los sexos; analizando el transcriptoma adrenal, ~40% de los niveles de expresión cambiaron en hembras, pero no en machos43. El dimorfismo sexual también afecta al hígado, pero más moderadamente45. Por tanto, las diferencias entre machos y hembras van más allá de los niveles hormonales, donde la presencia de diferentes niveles de expresión de receptores y/o enzimas de síntesis juega un papel fundamental.
Los estrógenos pueden ser antiinflamatorios a concentraciones altas, o proinflamatorios a dosis bajas46. Por ejemplo, en células T, la señalización por ERα puede inducir apoptosis e inhibir la expresión de Foxp3, un factor esencial de las células T reguladoras, que son importantes frenos en la respuesta inmune47. ERβ parece tener un papel inmunomodulador. La señalización en células T reguladoras del intestino a través de ERβ regula inmunosupresión48. En un modelo de neumonía por neumococo, donde las hembras presentan menos inflamación pulmonar y más células T reguladoras, la administración de estrógenos a machos ayudó a resolver la neumonía, independientemente de la carga bacteriana resultante; este efecto se debe a la presencia de ERβ en células T reguladoras49. Asimismo, la administración de progesterona en ratones hembra parece ser protectora frente a la infección con el virus de la gripe, incrementando factores como TGF-β , IL-6 y mejorando la barrera epitelial50. En un modelo de EPOC de ratón, la progesterona parece mejorar la función mitocondrial y reducir el estrés oxidativo en células epiteliales y músculo liso51. La testosterona también tiene asociados efectos generalmente antiinflamatorios52, aunque en determinados contextos puede conllevar mayor inflamación53. Por tanto, los efectos hormonales en el sistema inmune deben ser interpretados diferentemente dependiendo del estado (patológico o basal).
Además de diferencias en los niveles de hormonas, las proporciones de células inmunes también cambian entre sexos. En individuos europeos y asiáticos, se ha identificado un mayor número de células T CD4+ en hembras, particularmente de células naive54. Los varones tienen mayor proporción de monocitos, al igual que las hembras mayores de 40 años39. Además, la dinámica de las células T CD4+ ante infección por influenza es diferente en hembras que en machos39. La respuesta de las células a estímulos es también diferente: por ejemplo, existe una mayor respuesta de neutrófilos a LPS55 en varones, que suelen presentar un peor pronóstico en sepsis. Asimismo, en asma grave, la proporción de células Th2 está aumentada en hembras, y no en varones56; en ratones se ha detectado que los estrógenos protegen de la apoptosis a las células Th2, mientras que la testosterona la aumenta53. Los glucocorticoides y estrógenos parecen cooperar en su acción, y presentan diferentes efectos por separado que combinados, aumentando la función de células Th256. Estas observaciones, junto con los estudios demostrando las diferencias de biodisponibilidad de cortisol y el dimorfismo en la acción de glucocorticoides41,43,45 sugieren que los glucocorticoides, tanto endógenos como exógenos, afectan de modo diferente al sistema inmune de cada sexo. Por lo tanto, es posible que los niveles de estrógenos/testosterona/progesterona en el organismo alteren el efecto del tratamiento con glucocorticoides, que son recetados por igual entre sexos. Investigar las diferencias de los efectos de los glucocorticoides, tanto los antiinflamatorios como los efectos considerados secundarios, entre sexos es esencial para poder personalizar su uso y minimizar sus efectos no deseados.
Análisis usando ómica: posibilidades
La aplicación de técnicas avanzadas de biología molecular nos permite, además de determinar vías de señalización biológicas, explorar diferencias en la expresión de miles de moléculas a la vez. Esto se inició hace más de 40 años con los arrays57, microchips que contienen sondas complementarias a secuencias de ADN o ARN, y que se detectan por emisión de fluorescencia. Desde su origen hace más de 17 años, la secuenciación de nueva generación58 expandió el campo de la genómica, y su avance exponencial la ha hecho rutinaria en investigación y en algunas especialidades clínicas. La secuenciación de nueva generación aporta información acerca de la secuencia de nucleótidos (bases de ADN o ARN) y su abundancia, y por tanto permite determinar los posibles cambios en genes (genoma) y los niveles de ARN mensajero (transcriptoma). Su adaptación a otros tipos de moléculas o a compartimentos subcelulares permite determinar con precisión la presencia de moléculas entre tejidos, entre células y también dentro de diferentes compartimentos celulares (por ejemplo, ARN mensajero específicamente asociado a ribosomas). En su conjunto, estos métodos se conocen como ómica.
Dada la expansión de tecnología, también se han formado varios consorcios que están dedicados a hacer bases de datos, o atlas, de células de diferentes tejidos. Un ejemplo es GTEx59, un consorcio dedicado a establecer la expresión de transcriptoma en diferentes tejidos. Hay también varios consorcios mundiales centrados en la investigación y fenotipado molecular de pacientes con asma, como U-BIOPRED60, SARP61 o SHARP62, utilizando diferentes tipos de ómica en varios tipos de muestras, desde biopsias bronquiales, sangre, orina o partículas exhaladas. Estos recursos son muy valiosos para poder analizar diferencias entre grupos de pacientes en cohortes grandes, que permiten el análisis detallado de factores como sexo y edad, para poder interpretar datos y diseñar nuevos estudios.
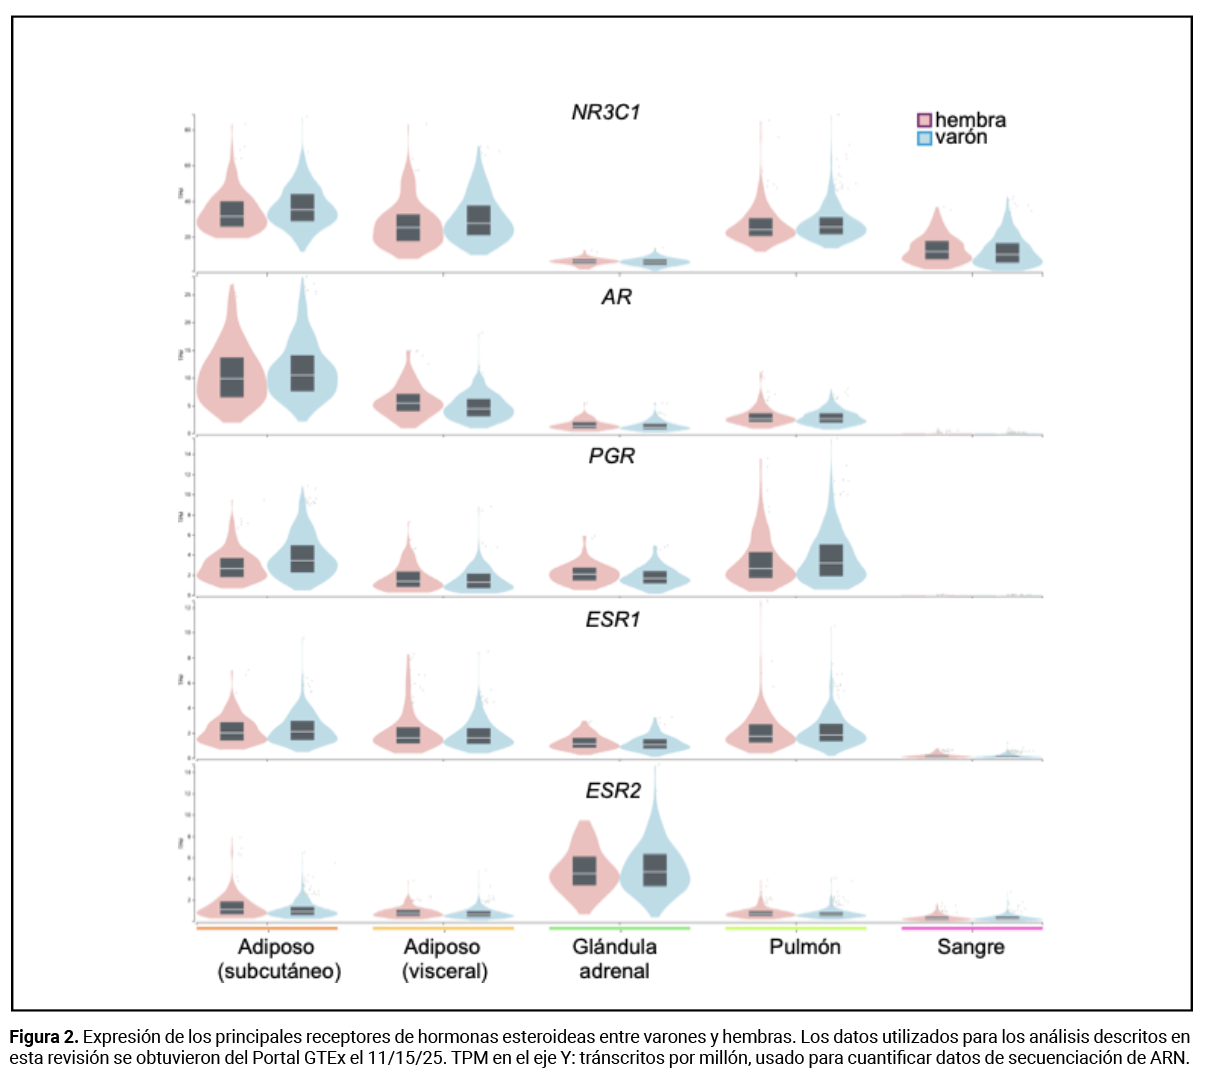
Las diferencias en proporciones celulares y de respuesta ante estímulos inflamatorios y glucocorticoides entre los sexos pueden relacionarse con diferencias en la expresión de sus receptores. Los receptores de hormonas esteroideas están distribuidos en los tejidos de forma diferencial. Esto se puede detectar analizando los niveles de expresión de los genes codificantes para los receptores de glucocorticoides (NR3C1), el receptor de andrógenos (AR), de la progesterona (PGR) y los receptores de estrógenos alfa (ESR1) y beta (ESR2) usando bases de datos como GTEx. La Figura 2 nos permite ver ligeras diferencias de expresión entre tejidos y entre sexos. Los tejidos presentados en esta revisión se centran en tejido adiposo, con distinta distribución entre sexos, glándulas adrenales por su importancia en la biología de los glucocorticoides, pulmón y sangre. Así, el NR3C1 parece muy poco expresado en glándulas adrenales, mientras que los varones parecen tener una ligera mayor expresión en tejido adiposo y pulmón. Los receptores de andrógenos y progesterona están prácticamente ausentes en sangre, que presenta una pequeña expresión de receptores a estrógenos alfa y beta. Estos patrones de expresión son un ejemplo de la complejidad que presentan, no solo los efectos de hormonas esteroideas, sino también sus diferentes dianas.
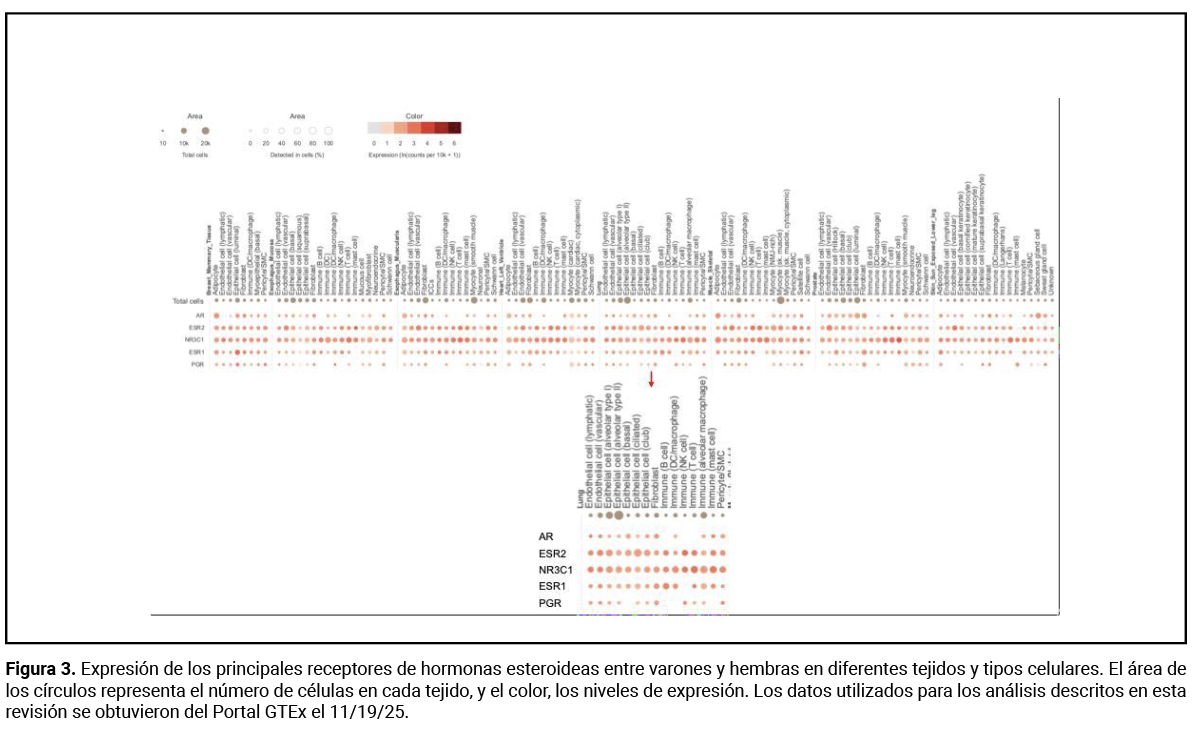 Un paso más allá es la secuenciación single cell, o célula a célula. Esta técnica permite determinar la presencia de unas 5.000 moléculas por célula, lo cual permite determinar cambios en la composición celular de tejidos que de otro modo pasan inadvertidos, debido a la homogeneización de varios tipos celulares en la mezcla analizada. La analogía es poder determinar los ingredientes presentes en un batido: si hay algo muy diferente entre dos mezclas, puede detectarse (transcriptoma clásico), pero pequeñas variaciones pasan por encima. Single cell ha permitido, por ejemplo, determinar la existencia de poblaciones celulares nuevas. En el campo del pulmón, quizás el ejemplo más conocido sean los ionocitos, células epiteliales especializadas en intercambio de iones, y que presentan la mayor expresión del gen CTRF, que mutado da lugar a fibrosis quística63.
Si analizamos la expresión de los receptores hormonales en cada tejido, podemos ver qué tipos celulares son los que presentan cada receptor. Así, se puede observar que en pulmón (lung), el receptor de progesterona está ausente de células epiteliales basales, donde predomina el receptor beta de estrógenos (ESR2) frente al alfa (ESR1), que parece más presente en células B. El receptor de glucocorticoides está presente en todos los tipos celulares analizados del pulmón, que es consecuente con su función esencial en el desarrollo pulmonar12. La presencia de diferentes niveles de receptores hormonales indica que cada tipo celular es susceptible de recibir señalización de hormonas sexuales (y sus fluctuaciones), que en su cómputo darán lugar al estado de activación celular.
Conclusiones
Los avances en biología molecular han permitido determinar las vías de señalización de hormonas y glucocorticoides, y descubrir nuevos factores que modulan sus efectos y las diferencias entre sexos. El dimorfismo sexual en humanos resulta de la combinación de diferencias hormonales, cromosómicas y de expresión de genes, dando lugar a diferencias en el estado inmunológico, la respuesta inmune a patógenos y la afectación por enfermedades inflamatorias. Sin embargo, el sexo no se considera como variable en muchos estudios, ya sea por complejidad, por falta de muestra o por desconocimiento. Asimismo, seguimos considerando las enfermedades que afectan distintamente a cada sexo solo en el ámbito de ginecología y urología. Considerando la diferente expresión de receptores hormonales en células inmunes y tejidos, las vías de señalización comunes entre glucocorticoides y hormonas, y las diferencias de niveles hormonales entre individuos, debemos plantearnos si los estudios que hacemos, sobre todo comparando los efectos en pacientes, son adecuados. Esto es más acusado en el caso de hembras, donde los cambios hormonales son muy grandes en diferentes etapas de la vida, con consecuencias en múltiples órganos. Si queremos hacer medicina personalizada, debe haber un cambio de mentalidad y enfoque, sobre todo considerando la cantidad de tecnología disponible. Hay multitud de estudios con observaciones solo llevadas a cabo en un sexo, “para no tener que considerar los efectos de fluctuaciones hormonales”. Herramientas como la bioinformática y la IA pueden informar acerca de las combinaciones óptimas a considerar, y la integración de datos públicos de diferentes consorcios puede guiar la selección de sujetos para los estudios. Investigar cómo los factores genéticos, moleculares y celulares asociados a cada sexo cooperan en la respuesta del organismo es esencial para poder entender mecanismos que subyacen diferencias en las múltiples patologías que nos afectan de modo diferente.
Financiamiento
Esta investigación no recibió ninguna subvención específica de agencias de financiamiento de los sectores públicos, comercial o sin fines de lucro.
Contribución de los autores
La autora certifica que ha contribuido directamente al contenido intelectual del manuscrito, a la búsqueda y análisis de sus datos, por lo cual se hace públicamente responsable de él.
Conflicto de intereses
La autora declara no tener conflicto de interés.
Uso de IA
La autora declara que no se utilizaron herramientas de inteligencia artificial en ninguna fase de la elaboración del manuscrito.
Referencias
- Lyon MF. Gene action in the X-chromosome of the mouse (Mus musculus L.). Nature. 1961;190:372–3. Disponible en: https://doi.org/10.1038/190372a0
- Fish EN. The X-files in immunity: sex-based differences predispose immune responses. Nat Rev Immunol. 2008;8(9):737–44. Disponible en: https://doi.org/10.1038/nri2394
- van Staa TP, Leufkens HG, Abenhaim L, Begaud B, Zhang B, Cooper C. Use of oral corticosteroids in the United Kingdom. QJM. 2000;93(2):105–11. Disponible en: https://doi.org/10.1093/qjmed/93.2.105
- Hardy RS, Raza K, Cooper MS. Therapeutic glucocorticoids: mechanisms of actions in rheumatic diseases. Nat Rev Rheumatol. 2020;16(3):133–44. Disponible en: https://doi.org/10.1038/s41584-020-0371-y
- Forsyth KS, Jiwrajka N, Lovell CD, Toothacre NE, Anguera MC. The conneXion between sex and immune responses. Nat Rev Immunol. 2024;24(7):487–502. Disponible en: https://doi.org/10.1038/s41577-024-00996-9
- Ramamoorthy S, Cidlowski JA. Corticosteroids: Mechanisms of Action in Health and Disease. Rheum Dis Clin North Am. 2016;42(1):15–31. Disponible en: https://doi.org/10.1016/j.rdc.2015.08.002
- Thau L, Gandhi J, Sharma S. Physiology, Cortisol. StatPearls. Treasure Island (FL); 2025.
- Slominski RM, Tuckey RC, Manna PR, et al. Extra-adrenal glucocorticoid biosynthesis: implications for autoimmune and inflammatory disorders. Genes Immun. 2020;21(3):150–68. Disponible en: https://doi.org/10.1038/s41435-020-0096-6
- Phan TS, Merk VM, Brunner T. Extra-adrenal glucocorticoid synthesis at epithelial barriers. Genes Immun. 2019;20(8):627–40. Disponible en: https://doi.org/10.1038/s41435-019-0058-z
- Rubinow KB. An intracrine view of sex steroids, immunity, and metabolic regulation. Mol Metab. 2018;15:92–103. Disponible en: https://doi.org/10.1016/j.molmet.2018.03.001
- Harding SD, Armstrong JF, Faccenda E, et al. The IUPHAR/BPS Guide to PHARMACOLOGY in 2024. Nucleic Acids Res. 2024;52(D1):D1438–49. Disponible en: https://doi.org/10.1093/nar/gkad944
- Cole TJ, Blendy JA, Monaghan AP, et al. Targeted disruption of the glucocorticoid receptor gene blocks adrenergic chromaffin cell development and severely retards lung maturation. Genes Dev. 1995;9(13):1608–21. Disponible en: https://doi.org/10.1101/gad.9.13.1608
- Gerber AN, Newton R, Sasse SK. Repression of transcription by the glucocorticoid receptor: A parsimonious model for the genomics era. J Biol Chem. 2021;296:100687. Disponible en: https://doi.org/10.1016/j.jbc.2021.100687
- Kirschke E, Goswami D, Southworth D, Griffin PR, Agard DA. Glucocorticoid receptor function regulated by coordinated action of the Hsp90 and Hsp70 chaperone cycles. Cell. 2014;157(7):1685–97. Disponible en: https://doi.org/10.1016/j.cell.2014.04.038
- Chandler VL, Maler BA, Yamamoto KR. DNA sequences bound specifically by glucocorticoid receptor in vitro render a heterologous promoter hormone responsive in vivo. Cell. 1983;33(2):489–99. Disponible en: https://doi.org/10.1016/0092-8674(83)90430-0
- Gertz J, Savic D, Varley KE, et al. Distinct properties of cell-type-specific and shared transcription factor binding sites. Mol Cell. 2013;52(1):25–36. Disponible en: https://doi.org/10.1016/j.molcel.2013.08.037
- Heck S, Kullmann M, Gast A, et al. A distinct modulating domain in glucocorticoid receptor monomers in the repression of activity of the transcription factor AP-1. EMBO J. 1994;13(17):4087–95. Disponible en: https://doi.org/10.1002/j.1460-2075.1994.tb06726.x
- Cho H, Park OH, Park J, et al. Glucocorticoid receptor interacts with PNRC2 in a ligand-dependent manner to recruit UPF1 for rapid mRNA degradation. Proc Natl Acad Sci U S A. 2015;112(13):E1540–9. Disponible en: https://doi.org/10.1073/pnas.1409612112
- Boo SH, Shin MK, Ha H, Woo JS, Kim YK. Transcriptome-wide analysis for glucocorticoid receptor-mediated mRNA decay reveals various classes of target transcripts. Mol Cells. 2024;47(11):100130. Disponible en: https://doi.org/10.1016/j.mocell.2024.100130
- Rynne J, Ortiz-Zapater E, Khooshemehri P, et al. The RNA binding proteins ZFP36L1 and ZFP36L2 modulate transcriptional and post-transcriptional genome-wide effects of glucocorticoids. bioRxiv. 2022;2022.09.27.509553. Disponible en: https://doi.org/10.1101/2022.09.27.509553
- Kato S, Endoh H, Masuhiro Y, et al. Activation of the Estrogen Receptor Through Phosphorylation by Mitogen-Activated Protein Kinase. Science. 1995;270(5241):1491–4. Disponible en: https://doi.org/10.1126/science.270.5241.1491
- Mutoh K, Tsukahara S, Mitsuhashi J, Katayama K, Sugimoto Y. Estrogen-mediated post transcriptional down-regulation of P-glycoprotein in MDR1-transduced human breast cancer cells. Cancer Sci. 2006;97(11):1198–204. Disponible en: https://doi.org/10.1111/j.1349-7006.2006.00300.x
- Khan D, Ansar Ahmed S. The Immune System Is a Natural Target for Estrogen Action: Opposing Effects of Estrogen in Two Prototypical Autoimmune Diseases. Front Immunol. 2015;6:635. Disponible en: https://doi.org/10.3389/fimmu.2015.00635
- Mani SK, Oyola MG. Progesterone signaling mechanisms in brain and behavior. Front Endocrinol (Lausanne). 2012;3:7. Disponible en: https://doi.org/10.3389/fendo.2012.00007
- Meffre D, Labombarda F, Delespierre B, et al. Distribution of membrane progesterone receptor alpha in the male mouse and rat brain and its regulation after traumatic brain injury. Neuroscience. 2013;231:111–24. Disponible en: https://doi.org/10.1016/j.neuroscience.2012.11.039
- Walker WH. Testosterone signaling and the regulation of spermatogenesis. Spermatogenesis. 2011;1(2):116–20. Disponible en: https://doi.org/10.4161/spmg.1.2.16956
- Simoncini T, Genazzani AR. Non-genomic actions of sex steroid hormones. Eur J Endocrinol. 2003;148(3):281–92. Disponible en: https://doi.org/10.1530/eje.0.1480281
- Strähle U, Klock G, Schütz G. A DNA sequence of 15 base pairs is sufficient to mediate both glucocorticoid and progesterone induction of gene expression. Proc Natl Acad Sci U S A. 1987;84(22):7871–5. Disponible en: https://doi.org/10.1073/pnas.84.22.7871
- Carolyn M, Klinge CVR. The Steroid Hormone Receptors. Glob Libr Women’s Med. 2008. Disponible en: https://doi.org/10.3843/GLOWM.10281
- Schiller BJ, Chodankar R, Watson LC, Stallcup MR, Yamamoto KR. Glucocorticoid receptor binds half sites as a monomer and regulates specific target genes. Genome Biol. 2014;15(7):418. Disponible en: https://doi.org/10.1186/s13059-014-0418-y
- So AY, Cooper SB, Feldman BJ, Manuchehri M, Yamamoto KR. Conservation analysis predicts in vivo occupancy of glucocorticoid receptor-binding sequences at glucocorticoid-induced genes. Proc Natl Acad Sci U S A. 2008;105(15):5745–9. Disponible en: https://doi.org/10.1073/pnas.0801551105
- Vockley CM, D’Ippolito AM, McDowell IC, et al. Direct GR Binding Sites Potentiate Clusters of TF Binding across the Human Genome. Cell. 2016;166(5):1269–81.e19. Disponible en: https://doi.org/10.1016/j.cell.2016.07.049
- Conrad N, Misra S, Verbakel JY, et al. Incidence, prevalence, and co-occurrence of autoimmune disorders over time and by age, sex, and socioeconomic status: a population-based cohort study of 22 million individuals in the UK. Lancet. 2023;401(10391):1878–90. Disponible en: https://doi.org/10.1016/S0140-6736(23)00457-9
- Brown CJ, Ballabio A, Rupert JL, et al. A gene from the region of the human X inactivation centre is expressed exclusively from the inactive X chromosome. Nature. 1991;349(6304):38–44. Disponible en: https://doi.org/10.1038/349038a0
- Brown CJ, Hendrich BD, Rupert JL, et al. The human XIST gene: analysis of a 17 kb inactive X-specific RNA that contains conserved repeats and is highly localized within the nucleus. Cell. 1992;71(3):527–42. Disponible en: https://doi.org/10.1016/0092-8674(92)90520-M
- Clemson CM, McNeil JA, Willard HF, Lawrence JB. XIST RNA paints the inactive X chromosome at interphase: evidence for a novel RNA involved in nuclear/chromosome structure. J Cell Biol. 1996;132(3):259–75. Disponible en: https://doi.org/10.1083/jcb.132.3.259
- Barr ML, Bertram EG. A morphological distinction between neurones of the male and female, and the behaviour of the nucleolar satellite during accelerated nucleoprotein synthesis. Nature. 1949;163(4148):676. Disponible en: https://doi.org/10.1038/163676a0
- Souyris M, Cenac C, Azar P, et al. TLR7 escapes X chromosome inactivation in immune cells. Sci Immunol. 2018;3(19). Disponible en: https://doi.org/10.1126/sciimmunol.aap8855
- Bongen E, Lucian H, Khatri A, et al. Sex differences in the blood transcriptome identify robust changes in immune cell proportions with aging and influenza infection. Cell Reports. 2019;29(7):1961–73.e4. Disponible en: https://doi.org/10.1016/j.celrep.2019.10.019
- Tannenbaum B, Rowe W, Sharma S, et al. Dynamic variations in plasma corticosteroid-binding globulin and basal HPA activity following acute stress in adult rats. J Neuroendocrinol. 1997;9(3):163–8. Disponible en: https://doi.org/10.1046/j.1365-2826.1997.t01-1-00550.x
- Viau V, Meaney MJ. Testosterone-dependent variations in plasma and intrapituitary corticosteroid binding globulin and stress hypothalamic-pituitary-adrenal activity in the male rat. J Endocrinol. 2004;181(2):223–31. Disponible en: https://doi.org/10.1677/joe.0.1810223
- Gala RR, Westphal U. Corticosteroid-binding globulin in the rat: studies on the sex difference. Endocrinology. 1965;77(5):841–51. Disponible en: https://doi.org/10.1210/endo-77-5-841
- Toews JNC, Philippe TJ, Hill LA, et al. Corticosteroid-binding globulin (SERPINA6) establishes postpubertal sex differences in rat adrenal development. Endocrinology. 2022;163(11). Disponible en: https://doi.org/10.1210/endocr/bqac152
- Ran FA, Hsu PD, Wright J, Agarwala V, Scott DA, Zhang F. Genome engineering using the CRISPR-Cas9 system. Nat Protoc. 2013;8(11):2281–308. Disponible en: https://doi.org/10.1038/nprot.2013.143
- Toews JNC, Philippe TJ, Dordevic M, Hill LA, Hammond GL, Viau V. Corticosteroid-binding globulin (SERPINA6) consolidates sexual dimorphism of adult rat liver. Endocrinology. 2023;165(1). Disponible en: https://doi.org/10.1210/endocr/bqad179
- Straub RH. The complex role of estrogens in inflammation. Endocr Rev. 2007;28(5):521–74. Disponible en: https://doi.org/10.1210/er.2007-0001
- Mohammad I, Starskaia I, Nagy T, et al. Estrogen receptor alpha contributes to T cell-mediated autoimmune inflammation by promoting T cell activation and proliferation. Sci Signal. 2018;11(526). Disponible en: https://doi.org/10.1126/scisignal.aap9415
- Goodman WA, Bedoyan SM, Havran HL, Richardson B, Cameron MJ, Pizarro TT. Impaired estrogen signaling underlies regulatory T cell loss-of-function in the chronically inflamed intestine. Proc Natl Acad Sci U S A. 2020;117(29):17166–76. Disponible en: https://doi.org/10.1073/pnas.2002266117
- Xiong Y, Zhong Q, Palmer T, et al. Estradiol resolves pneumonia via ERβ in regulatory T cells. JCI Insight. 2021;6(3). Disponible en: https://doi.org/10.1172/jci.insight.133251
- Hall OJ, Limjunyawong N, Vermillion MS, et al. Progesterone-based therapy protects against influenza by promoting lung repair and recovery in females. PLoS Pathog. 2016;12(9):e1005840. Disponible en: https://doi.org/10.1371/journal.ppat.1005840
- Xie B, Chen Q, Dai Z, Jiang C, Chen X. Progesterone (P4) ameliorates cigarette smoke-induced chronic obstructive pulmonary disease (COPD). Mol Med. 2024;30(1):123. Disponible en: https://doi.org/10.1186/s10020-024-00883-y
- Ho CH, Fan CK, Yu HJ, et al. Testosterone suppresses uropathogenic Escherichia coli invasion and colonization within prostate cells and inhibits inflammatory responses through JAK/STAT-1 signaling pathway. PLoS One. 2017;12(6):e0180244. Disponible en: https://doi.org/10.1371/journal.pone.0180244
- Huber SA, Kupperman J, Newell MK. Estradiol prevents and testosterone promotes Fas-dependent apoptosis in CD4+ Th2 cells by altering Bcl-2 expression. Lupus. 1999;8(5):384–7. Disponible en: https://doi.org/10.1177/096120339900800511
- Patin E, Hasan M, Bergstedt J, et al. Natural variation in the parameters of innate immune cells is preferentially driven by genetic factors. Nat Immunol. 2018;19(3):302–14. Disponible en: https://doi.org/10.1038/s41590-018-0049-7
- Aomatsu M, Kato T, Kasahara E, Kitagawa S. Gender difference in tumor necrosis factor-α production in human neutrophils stimulated by lipopolysaccharide and interferon-γ. Biochem Biophys Res Commun. 2013;441(1):220–5. Disponible en: https://doi.org/10.1016/j.bbrc.2013.10.042
- Vijeyakumaran M, Jawhri MA, Fortunato J, et al. Dual activation of estrogen receptor alpha and glucocorticoid receptor upregulate CRTh2-mediated type 2 inflammation; mechanism driving asthma severity in women? Allergy. 2023;78(3):767–79. Disponible en: https://doi.org/10.1111/all.15543
- Taub FE, DeLeo JM, Thompson EB. Sequential comparative hybridizations analyzed by computerized image processing can identify and quantitate regulated RNAs. DNA. 1983;2(4):309–27. Disponible en: https://doi.org/10.1089/dna.1983.2.309
- Wheeler DA, Srinivasan M, Egholm M, et al. The complete genome of an individual by massively parallel DNA sequencing. Nature. 2008;452(7189):872–6. Disponible en: https://doi.org/10.1038/nature06884
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318–30. Disponible en: https://doi.org/10.1126/science.aaz1776
- Shaw DE, Sousa AR, Fowler SJ, et al. Clinical and inflammatory characteristics of the European U-BIOPRED adult severe asthma cohort. Eur Respir J. 2015;46(5):1308–21. Disponible en: https://doi.org/10.1183/13993003.00779-2015
- Teague WG, Phillips BR, Fahy JV, et al. Baseline features of the Severe Asthma Research Program (SARP III) cohort: differences with age. J Allergy Clin Immunol Pract. 2018;6(2):545–54.e4. Disponible en: https://doi.org/10.1016/j.jaip.2017.05.032
- Djukanovic R, Adcock IM, Anderson G, et al. The Severe Heterogeneous Asthma Research collaboration, Patient-centred (SHARP) ERS Clinical Research Collaboration: a new dawn in asthma research. Eur Respir J. 2018;52(5). Disponible en: https://doi.org/10.1183/13993003.01671-2018
- Plasschaert LW, Zilionis R, Choo-Wing R, et al. A single-cell atlas of the airway epithelium reveals the CFTR-rich pulmonary ionocyte. Nature. 2018;560(7718):377–81. Disponible en: https://doi.org/10.1038/s41586-018-0394-6
Explorar
Artículos
Volúmenes
Sobre la revista
Más leídos
Peculiaridades de la EREA e implicaciones en su manejo en asma grave
Revista de Asma
Controversias en asma grave eosinofílica
Revista de Asma
Diagnóstico radiológico en el asma, más allá de la función pulmonar
Revista de Asma
Fenotipo hipersecretor en asma, diagnóstico e implicaciones
Revista de Asma
Asma y menopausia: Implicaciones fisiopatológicas, clínicas y terapéuticas
Revista de Asma